
ポイント:
- 細菌に感染するウイルス(バクテリオファージ)の溶菌タンパク質SglPP7が、細胞壁の材料を運ぶ膜タンパク質MurJの働きを止める仕組みを、クライオ電子顕微鏡による立体構造解析と機能解析から明らかにしました。
- 他のファージの溶菌タンパク質との比較から、MurJの動きを妨げる共通する仕組みと、それぞれのタンパク質に特徴的な結合様式が観察されました。この結果は、異なるタンパク質が似た阻害戦略を獲得する「収斂進化」の可能性を示唆するとともに、同じ標的を阻害する分子機構の多様性を示しています。
- 本成果は、ファージが細菌の生存に欠かせない仕組みを阻害する共通戦略への理解を深めるとともに、MurJを標的とする新たな抗菌薬の開発に向けた基盤的知見を提供します。
【概要】
奈良先端科学技術大学院大学(学長:塩﨑一裕)先端科学技術研究科バイオサイエンス領域構造生命科学研究室の塚崎智也教授、甲賀栄貴助教、宮崎亮次助教、博士後期課程学生の細田凱斗、呉思賢らの研究グループは、同大学蛋白質デザイン工学研究室の謝銘輝准教授、高輝度光科学研究センター(JASRI)の重松秀樹主幹研究員との共同研究により、細菌に感染するウイルス(バクテリオファージ※1)が持つ小さな溶菌タンパク質SglPP7が、細胞壁の材料を運ぶ膜タンパク質MurJの働きを阻害する仕組みを明らかにしました。さらに、他のファージの溶菌タンパク質との比較から、細菌の同じ急所を狙う共通の戦略と、それぞれに特徴的な結合様式を明らかにしました。
細菌の細胞壁は、細胞の形を保ち、内部の圧力から細胞を守るために欠かせません。MurJは、細胞壁の材料である「リピドII」を細胞膜の内側から外側へ運ぶタンパク質で、形を変えることで輸送を行います。一部のファージは、このMurJの働きを止める溶菌タンパク質を利用し、細胞壁づくりを妨げて細菌を破裂させます。しかし、アミノ酸配列の異なる溶菌タンパク質が、どのように同じMurJを阻害するのかは十分に分かっていませんでした。
今回の研究では、クライオ電子顕微鏡※2を用いてMurJとSglPP7の複合体の立体構造を解析しました。その結果、SglPP7がMurJの溝に結合するとともに、C末端部分を内部の空洞に差し込んでいることが分かりました。構造解析と機能解析、分子動力学シミュレーションの結果から、SglPP7がMurJを外向き構造に安定化し、輸送に必要な構造変化を妨げるモデルを提案しました。さらに、他のファージの溶菌タンパク質との比較により、「収斂進化」の可能性を示唆するとともに、同じ標的を阻害する分子機構の多様性を示しました。
本研究は、ファージが細菌の生存に欠かせない仕組みを阻害する戦略を、共通性と多様性の両面から理解する手掛かりとなります。また、今回明らかになった結合様式は、MurJを標的とする新たな抗菌薬の開発に向けた基盤的知見を提供します。
本研究成果は、国際科学雑誌「PLOS Biology」に2026年10月28日(水)午前3時(日本時間)に公開されました(DOI:10.1371/journal.pbio.3004039)。
論文情報:
タイトル:Structural basis for inhibition of the lipid flippase MurJ by phage lysis protein SglPP7 suggests convergent evolution with other Sgl peptides
(ファージ溶菌タンパク質SglPP7による脂質輸送体MurJの阻害機構の構造基盤は、他のSgl溶菌ペプチドとの収斂進化を示唆する)
著者:Kaito Hosoda, Hidetaka Kohga, Sixian Wu, Hiroyuki Tanaka, Hideki Shigematsu, Ryoji Miyazaki, Min Fey Chek, and Tomoya Tsukazaki
(細田凱斗、甲賀栄貴、呉思賢、田中宏幸、重松秀樹、宮崎亮次、謝銘輝、塚崎智也)
掲載誌:PLOS Biology
DOI:10.1371/journal.pbio.3004039
【背景と目的】
真正細菌は、細胞膜の外側に細胞の形を維持するための細胞壁を持っています。ペニシリンなど多くの抗生物質は、この細胞壁の合成を妨げることで効果を発揮します。細胞壁の材料である前駆体分子「リピドII」は、細胞膜の内側で合成された後、膜タンパク質MurJによって外側へ運ばれ、細胞壁の形成に使われます。MurJは、細胞質側またはペリプラズム側に向かってV字型に開いた「内向き型」と「外向き型」の2つの状態を交互に繰り返すことで、リピドIIを輸送します(図1左)。この輸送が止まると細胞壁を正常に作れなくなるため、MurJは新たな抗菌薬の標的として注目されています。
細菌に感染するウイルスであるバクテリオファージの多くは、細菌の中で増殖した後、細胞を破裂させて外へ出ます。この現象を「溶菌」と呼びます。一部のファージは、わずか数十個のアミノ酸からなる小さなタンパク質でMurJを阻害し、細胞壁づくりを妨げることで溶菌を引き起こします。研究グループではこれまでに、その一つであるLysMがMurJの溝にくさびのように入り込み、輸送に必要な構造変化を妨げる仕組みを明らかにしてきました(図1右)。

図1:MurJは、細胞質で合成された前駆体分子リピドIIを、構造を「内向き型」と「外向き型」に切り替えることで膜の外側へ運ぶ。LysMはMurJを外向き型で固定することで、MurJの機能を阻害する。
一方、ファージPP7が持つ溶菌タンパク質SglPP7もMurJを標的としますが、そのアミノ酸配列はLysMなどとは大きく異なります。配列の異なるタンパク質が、どのように同じMurJを認識し、その働きを止めるのか、共通する仕組みと固有の仕組みは十分に分かっていませんでした。そこで本研究では、クライオ電子顕微鏡による立体構造解析と機能解析を組み合わせ、SglPP7がMurJに結合して働きを阻害する仕組みの解明を目指しました。
【研究の内容】
研究グループは、SglPP7がMurJにどのように結合し、その機能を阻害するのかを明らかにするために、MurJとSglPP7の複合体を精製し、細胞膜に近い環境を再現する脂質ナノディスクに組み込んで、クライオ電子顕微鏡による立体構造解析を行いました。その結果、複合体の構造を3.2 Åの分解能※3で決定しました。得られた構造では、MurJは外向き構造をとり、SglPP7の膜貫通ヘリックスがMurJの溝に結合するとともに、C末端部分がMurJ内部の空洞に入り込んでいました(図2上段)。また、分子動力学シミュレーションでは、SglPP7の結合によってMurJの構造の揺らぎが抑えられました。これらの結果から、SglPP7がMurJを外向き構造に安定化し、リピドIIの輸送に必要な構造変化を妨げる阻害モデルを提案しました(図2下段)。
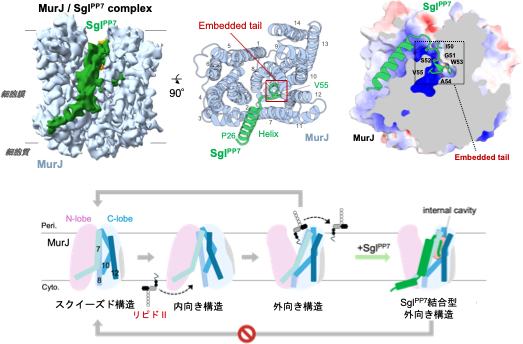
図2:SglPP7とMurJの立体構造および輸送阻害モデル
上段:クライオ電子顕微鏡で明らかにしたMurJとSglPP7の複合体構造。SglPP7(緑色)のヘリックスがMurJ(水色)の溝に結合し、C末端部分がMurJ内部の空洞に入り込んでいる。左は細胞膜を横から見た構造、中央は90度回転させた構造、右はC末端部分が入り込む様子を示した断面図。
下段:SglPP7によるMurJの輸送阻害モデル。MurJは構造を変化させながら、細胞壁の材料であるリピドIIを細胞膜の内側から外側へ運ぶ。SglPP7が結合すると、MurJが外向き構造に固定され、次の輸送に必要な構造変化が妨げられる。
さらに変異体を用いて、SglPP7のC末端領域のどの部分が機能に重要かを解析しました。その結果、C末端部分が溶菌作用に重要であることが分かりました。特に、MurJ内部の空洞に入り込む53番目のトリプトファン(W53)をリシンやアルギニンに置き換えると、溶菌活性が失われました。これらの結果は、C末端部分の性質がSglPP7の機能に重要であることを示しています。MurJ内部の空洞に入り込む末端のうち、特にトリプトファンが溶菌作用に重要な役割を持つことが分かりました。これらの機能解析の結果は、構造から見えてきた末端部分の重要性を裏付けました。
さらに、SglPP7の結合様式を、他のファージに由来する溶菌タンパク質LysMやSglCJ3と比較しました。これらはアミノ酸配列が異なるにもかかわらず、MurJの構造変化に関わる共通の領域に結合していました(図3)。この共通性は、異なる溶菌タンパク質が、同じ標的の動きを止める似た戦略を獲得したという「収斂進化」の可能性を示唆しています。一方、C末端部分の配置は大きく異なり、SglPP7ではMurJ内部の空洞に深く入り込むのに対し、LysMでは膜表面に沿ってMurJの外側に結合し、SglCJ3では一部が空洞内へ伸びていました。こうした比較から、同じ標的を阻害する戦略の共通性と、結合様式の多様性を明らかにしました。
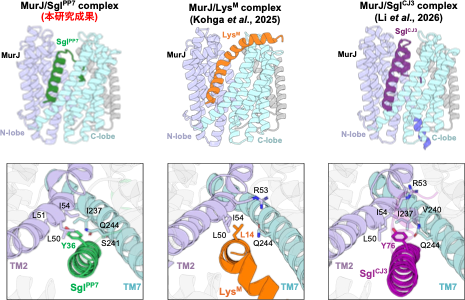
図3:異なるファージ溶菌タンパク質によるMurJ結合様式の比較
上段:SglPP7(緑色、本研究)、LysM(橙色)、SglCJ3(紫色)が結合したMurJの立体構造。いずれもMurJの共通する溝に結合し、外向き構造を安定化する一方、タンパク質の形や結合様式には違いが見られる。
下段:MurJの膜貫通ヘリックスTM2とTM7の間にある結合部位の拡大図。各溶菌タンパク質のアミノ酸側鎖がMurJの類似したポケットに入り込む一方、ヘリックスの配置や周囲との相互作用は異なる。
【今後の展開】
本研究により、ファージの溶菌タンパク質がMurJを阻害する仕組みには、共通する戦略と、それぞれに固有の結合様式があることが明らかになりました。今後、さらに多様な溶菌タンパク質の構造と機能を調べることで、異なるタンパク質がどのように同じ標的を阻害する仕組みを獲得してきたのか、その進化的背景の理解につながると期待されます。また、今回明らかになったMurJとの結合部位や、阻害に重要なタンパク質の末端部分の構造は、MurJの働きを止める分子を設計するための手掛かりとなり、薬剤耐性菌を含む病原性細菌に対する新たな抗菌薬の開発につながることが期待されます。
【用語解説】
※1.バクテリオファージ
細菌に感染して増殖するウイルスの総称。細菌の中に入り込み、自身の複製とともに宿主細菌を破壊する性質を持つ。自然界には多様な種類が存在する。
※2.クライオ電子顕微鏡
タンパク質の構造解析に広く用いられている、試料を極低温に冷却し、電子顕微鏡で観察する手法。X線結晶構造解析では困難だった、結晶化が難しいタンパク質の構造解析に大きく貢献している。
※3.分解能
対象物の細部をどの程度まで識別できるかを示す指標。本稿での高い分解能とは、その値(単位はÅ)がより低いものを指し、それだけ細部まで識別可能になる。
発表者・問い合わせ先など:
<研究に関すること>
奈良先端科学技術大学院大学 先端科学技術研究科 バイオサイエンス領域 構造生命科学研究室
教授 塚崎 智也
研究室紹介ホームページ:https://bsw3.naist.jp/tsukazaki/
奈良先端科学技術大学院大学 先端科学技術研究科 バイオサイエンス領域 構造生命科学研究室
助教 甲賀 栄貴
高輝度光科学研究センター 回折・散乱推進室
主幹研究員・コーディネーター 重松 秀樹
<報道に関すること>
奈良先端科学技術大学院大学 企画総務課 渉外企画係
TEL:0743-72-5063/5112 FAX:0743-72-5011 E-mail:s-kikaku[at]ad.naist.jp
高輝度光科学研究センター 利用推進部 普及情報課
TEL:0791-58-2785 E-mail:kouhou[at]spring8.or.jp

